|
(21), (22) Заявка: 2001131351/15, 19.04.2000
(24) Дата начала отсчета срока действия патента:
19.04.2000
(30) Конвенционный приоритет:
20.04.1999 DE 19917990.5
(43) Дата публикации заявки: 20.08.2003
(46) Опубликовано: 10.12.2006
(15) Информация о коррекции:
Версия коррекции № 1 (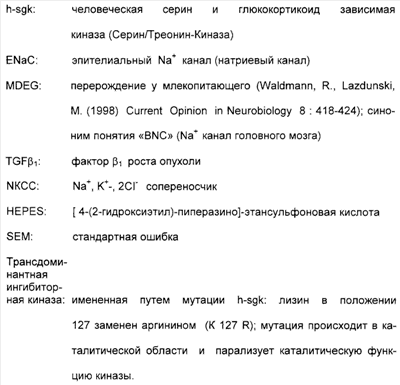
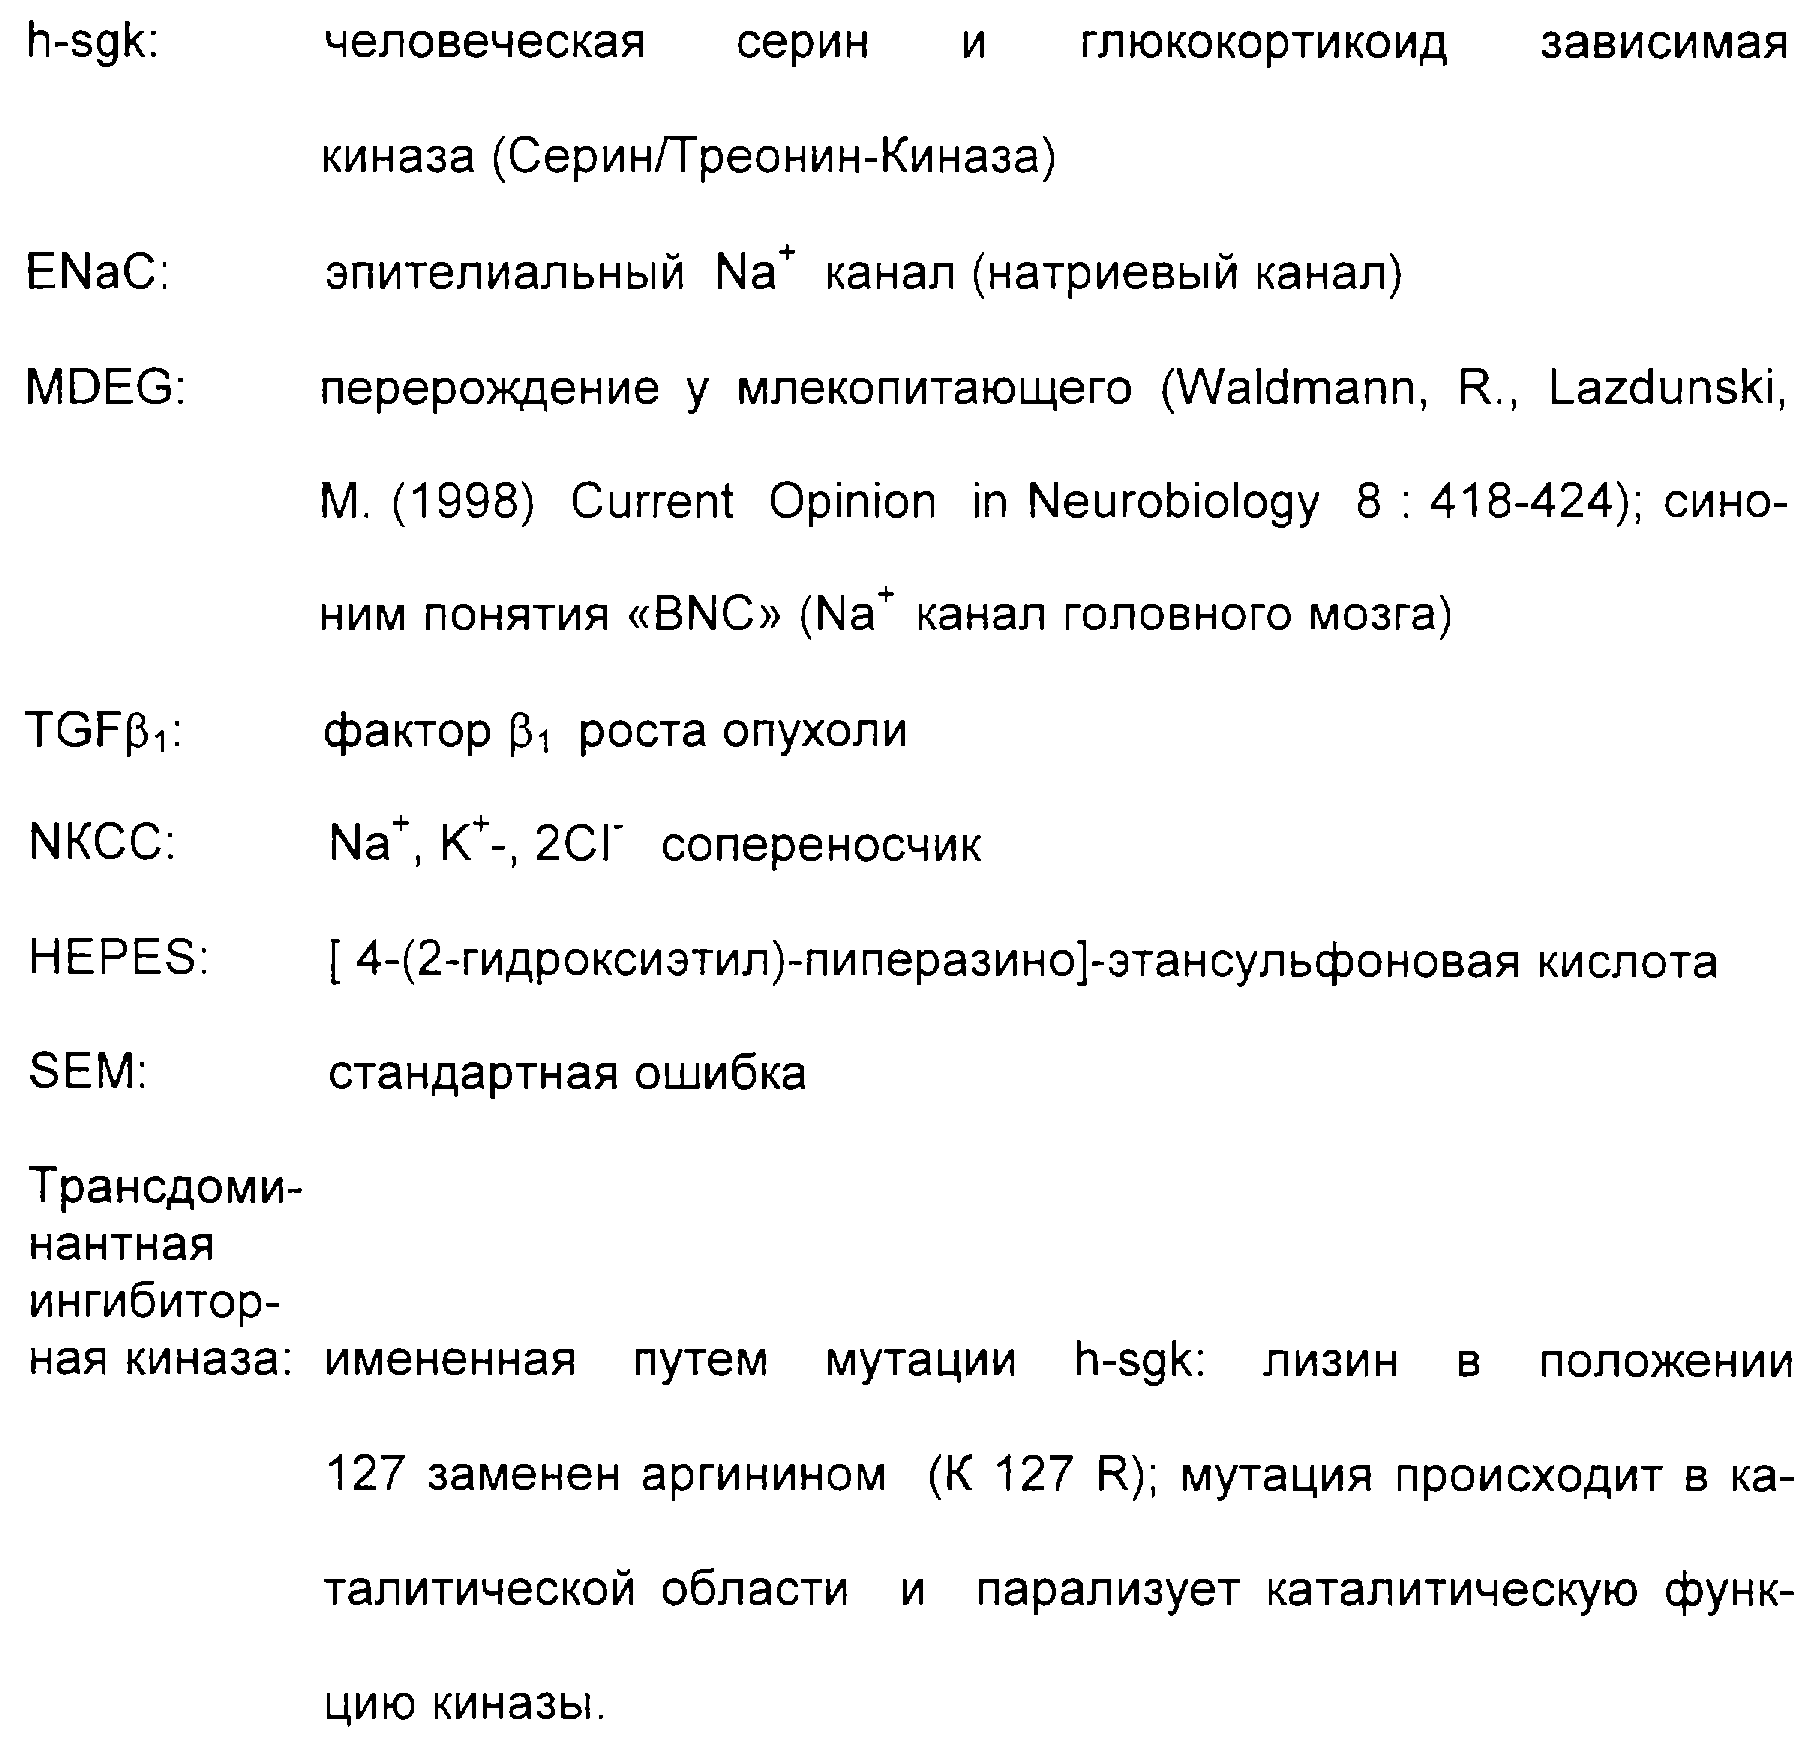
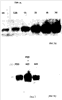
Повышение экспрессии h-sgk ярко выражается при таких болезнях, как: сахарный диабет, артериосклероз, болезнь Альцгеймера, цирроз печени, болезнь Крона, фиброзный панкреатит, фиброз легких и хронический бронхит. Повышенное образование h-sgk можно объяснить стимуляцией экспрессии через фактор TGF 1 (фиг.1). Причиной фиброзных заболеваний является высокая степень образования и слабая степень расщепления матричных протеинов. Оба явления являются результатом действия фактора TGF1. В фибробластах можно приостановить повышенную экспрессию матричных протеинов посредством подавления NKCC фуросемидом (фиг.2). До сих пор было не ясно, является ли повышенная экспрессия h-sgk лишь следствием или причиной заболевания.
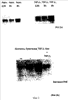
Данные анализа удивительным образом подтверждают, что h-sgk активирует Na+, K+, 2Cl– соперенос (фиг.3). Отсюда можно сделать вывод, что стимуляция NKCC посредством h-sgk вызывает фиброз. Наряду с Na+, K+, 2Сl– сопереносом посредством h-sgk активируются еще ENaC (фиг.4 и 5) и MDEG.
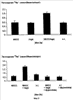
Стимулирующее действие h-sgk на ENaC можно приостановить с помощью ингибитора киназы, как например, стауроспорин (Sigma, D-8204 Deisenhofen) или хелеритрин (Sigma, loc.cit.) (фиг.4). Кроме этого, действие h-sgk на ENaC можно приостановить, например, с помощью трансдоминантной ингибиторной киназы (фиг.5). Поэтому ингибиторы h-sgk, такие как стауроспорин, хелеритрин или другие ингибиторы киназ, могли бы быть использованы при лечении названных выше заболеваний. В основном для этих целей пригодны все известные ингибиторы киназ. Ингибиторы киназ во многих случаях можно приобрести в торговой сети, например, фирмы Calbiochem-Novabiochem GmbH, Lisztweg 1, D-65812 Bad Soden (“1998 General Catalog”). Другие ингибиторы киназ можно приобрести из других коммерческих и некоммерческих источников, известных специалисту.
При эпилептическом приступе h-sgk многократно экспримируется. Обнаруженные нами данные показывают, что полезными являются воздействия, снижающие возбудимость нейронов, так как активация NKCC приводит к снижению внеклеточной концентрации К* и, как следствие этого, гиперполяризации и связанному с этим подавлению активности нейронов. Кроме этого, подавление MDEG должно сдерживать возбудимость нейронов. Поэтому активаторы киназы, превышающие гемато-энцефалический барьер, могли бы успешно применяться при эпилептических приступах. И наоборот, сдерживание киназы могло бы в сочетании с медикаментами, превышающими гемато-энцефалический барьер, повышать внимательность и способность к учению. Активаторы киназ давно известны специалистам, особый интерес представляют С-активаторы протеинкиназы (смотри Calbiochem-Novabiochem 1998 General Catalog, loc.cit). Другие активаторы киназ можно приобрести из других известных специалисту коммерческих и не коммерческих источников.
Поскольку Na+, K+, 2Cl– соперенос и Na+-канал играют важную роль при почечной Na+ резорбции, а повышенная почечная Na+-резорбция протекает при гипертонии, следует предположить, что повышение экспрессии киназы приводит к гипертонии, а понижение экспрессии киназы к гипотонии.
Настоящее изобретение касается, таким образом, также применения ингибиторов h-sgk для получения лекарственных средств для лечения сахарного диабета, артериосклероза, болезни Альцгеймера, цирроза печени, болезни Крона, фиброзного панкреатита, фиброза легких, хронического бронхита, радиационного фиброза, склеродермии, кистозного фиброза и других фиброзных заболеваний, а также для лечения артериальной гипертонии. Кроме этого, лекарственные средства, содержащие ингибиторы или активаторы h-sgk можно использовать для регулирования нейрональной возбудимости. В особенности предпочтительно применение в качестве ингибиторов стауроспорина или хелеритрина, а также их аналогов.
Результаты
Диабетическая почка:
В обычной почке h-sgk лишь слабо экспримирована. Четкая экспрессия h-sgk обнаруживается в отдельных клетках почечного клубочка, поздних проксимальных и дистальных канальцев. В отличие от этого в диабетической почке обнаруживаются скопления клеток с массивной эспрессией h-sgk.
Артериосклероз:
В стенках артериосклеротических сосудов обнаруживается увеличение массива экспримирующих h-sgk клеток.
Болезнь Альцгеймера:
В обычном мозгу обнаружены лишь отдельные клетки, экспримирующие h-sgk. Этими клетками, очевидно, являются олигодендроглиальные клетки. При болезни Альцгеймера наблюдается значительное увеличение числа клеток, экспримирующих h-sgk.
Цирроз печени:
В обычной печени h-sgk экспримирует лишь в Купфферовских клетках. При циррозе печени ткани усеяны клетками, экспримирующими h-sgk.
Болезнь Крона:
В нормальной ткани кишечника h-sgk экспримирует исключительно в энтероцитах. При болезни Крона киназу обнаруживают также и в соединительной ткани.
Фиброзный панкреатит:
В нормальной поджелудочной железе h-sgk обнаруживают в ацинарных клетках и мигрирующих клетках. Одиночные группы h-sgk-экспримирующих одноядерных клеток обнаруживаются вокруг входа в поджелудочную железу. При фиброзном панкреатите отчетливо повышается экспрессия киназы.
Фиброз легких и хронический бронхит:
Массивная экспрессия h-sgk наблюдается при фиброзе легких и хронических бронхитах.
Стимуляция h-sgk-экспрессии посредством фактора TGF1;
Экспрессия h-sgk стимулируется посредством фактора TGF1 (фиг.1). Поскольку TGF1 образуется в фиброзных воспаленных тканях, то этим объясняется повышенная экспрессия h-sgk в воспаленной ткани.
TGF1 стимулирует экспрессию матричного протеина бигликана, процесс, который приостанавливается под влиянием ингибитора NKCC фуросемида.
TGF1 стимулирует экспрессию бигликана. В присутствии NKCC-ингибитора фуросемида действие фактора TGF1 на экспрессию бигликана полностью парализовано. Таким образом, фиброзное действие фактора TGF1 предполагает активирование NKCC (фиг.2).
Стимулирование NKCC посредством h-sgk:
Повышенная экспрессия киназы в фиброзных тканях может иметь различное значение, не имеющее причинной связи с фиброзом. Однако эксперименты с двухэлектродной клеммой напряжения показывают, что активность NKCC массированно стимулируется h-sgk (фиг.3). Эти данные исследования, принимая во внимание чувствительность фуросемида при синтезе бигликана, однозначно доказывают причинную роль h-sgk при фиброзе.
Стимулирование ENaC посредством h-sgk:
Этот процесс можно приостановить посредством ингибиторов киназы стауроспорина и хелеритрина. Как показано на фиг.4, поток через ENaC значительно возрастает благодаря соэкспрессии с h-sgk. Киназа, таким образом, стимулирует ENaC. Под воздействием ингибиторов киназы стауроспорина и хелеритрина можно полностью приостановить активирование ENaC посредством h-sgk.
Стимулирование эпителиального ENaC посредством h-sgk может измениться прямо в противоположную сторону из-за соэкспрессиии трансдоминантной ингибиторной h-sgk киназы:
Как показано на фиг.5, стимулирующее действие h-sgk-соэкспрессии на Na+-поток, обусловленный ENaC, можно приостановить посредством соэкспрессиии трансдоминантной ингибиторной киназы. Эта трансдоминантно-ингибиторная киназа (смотри раздел “Толкование понятий”) при катализе так изменяется, что она не может больше развивать свою функцию. Но поскольку она наслаивается на субстрат, она вытесняет активную киназу и подавляет таким образом ее действие. Трансдоминантно-ингибиторная киназа подавляет не только рост ENaC-активности посредством экзогенной h-sgk, но и, по всей видимости, угнетает стимулирование посредством эндогенной h-sgk.
MDEG полностью исключается благодаря соэкспрессии с h-sgk:
Как показано на фиг.6, экспрессия MDEG индуцирует в овоцитах сильный Na+-поток, который активируется путем снижения внеклеточной величины рН. Канал полностью блокируется за счет соэкспрессии с h-sgk. Отсюда напрашивается вывод, что h-sgk подавляет нейрональную возбудимость.
Примеры:
Пример 1: Гибридизация in situ
Ткани нормальной поджелудочной железы, печени, сосудов, мозга, легких, почек и кишечника, а также ткани при диабетической нефропатии, артериосклерозе, болезни Альцгеймера, циррозе печени, болезни Крона, фиброзном панкреатите и фиброзе легких в 4% параформальдегид/0,1М натрийфосфатном буфере (рН 7,2) заливают на 4 часа в парафин. Из срезов ткани удаляют парафин и проводят гибридизацию, как это описано ранее (Kandolf, R., D. Ameis, P. Kirschner A., Canu, P.H. Hofschneider, Proc. Natl. Acad. Sci. USA 84: 6272-6276, 1987; HohenadI, С., К., Klingel, J. Mertsching, P.H. Hofschneider, R. Kandolf., Mol. Cell. Probes 5: 11-20, 1991; Klingel,К.., С. HohenadI, A. Canu, M. Albrecht, M. Seemann, G. Mall, R. Kandolf, Proc. Natl. Acad. Sci. USA, 89:314-318, 1992).
Гибридизированная смесь содержит или кодирующую h-sgk, 35S-маркированную сенс-РНК, или комплементарную к последней РНК, 35S-маркированную антисенс-РНК (по мере необходимости 500 нг/мл) в 10 мМ Трис-HCl, рН 7,4; 50% (объем/объем) деионизированного формамида; 600 мМ NaCl; 1 мМ EDTA (этилендиаминтетрауксусная кислота); 0,02% поливинилпирролидона; 0,02% фиколла; 0,05% телячьего сывороточного альбумина; 10% декстрансульфата; 10 мМ дитиотреитола; 200 мкг/мл денатурированной соницированной (гомогенат, полученный под воздействием ультразвука) ДНК спермы лосося и 100  г/мл тРНК печени кролика.
Гибридизацию с РНК-пробами проводят при температуре 42°С в течение 18 часов. Носители объектов промывают, как это описано в (HohenadI et al., 1991; Klingel et al., 1992), а затем проводят инкубацию в течение 1 часа при температуре 55°С в двухстандартном цитрате натрия. Негибридизированные пробы однонитевых РНК подвергают ферментативному разложению посредством РНКазы А (20 (г/мл) в 10 мМ Трис-HCl, рН 8,0/0,5 М NaCl в течение 30 мин при температуре 37°С. Пробы ткани в течение трех недель ауторадиографируют (Klingel et al., 1992) и окрашивают гематоксилин/эозином.
Пример 2: Транскрипционное регулирование бигликана и h-sgk.
Клетки культивируют в RPMi / 5% СО2 / 10 мМ глюкозы при температуре 37°С, рН 7,4, добавляя к 10% (объем/объем) зародышевой телячьей сыворотки (FCS). Клетки культивируют до 90% слияния и после этого гомогенезируют в тризоле (GIBCO/BRL) (примерно 0,4×10⁶ на образец). Полную РНК препарируют согласно указанию производителя. Блоты по Нортону разделяют методом электрофореза с 15 или 20 мкг/мл полной РНК с раздельным контролем в присутствии 2,4 моль/л формальдегида с использованием 10 г/л агарового геля. В вакууме (Appligene Oncor Trans DNA Express Vacuum Blotter, Appligene, Хайдельберг, Германия) РНК переносят на положительно заряженные нейлоновые мембраны (Boehringer Маннгейм, Гермния) и сшивают под воздействием ультрафиолетового света (UV Stratalinker 2400, Stratagane, Хайдельберг, Германия). Гибридизацию проводят в течение ночи с применением DIG-Easy-Hyb (Boehringer Маннгейм) при концентрации проб 25 г/л при температуре 50°С. Дигоксигенин (DIG)-маркированные пробы получают с помощью полимеразной цепной реакции (ПЦР), как это подробно описано в (Waldegger et. al. (1997) PNAS 94: 4440-4445). Для ауторадиографии фильтры экспонируют на рентгеновскую пленку (Кодак) в среднем в течение 5 мин.
Пример 3: Эксперименты с помощью двухэлектродной клеммы напряжения и меченых атомов.
Рассечение Xenopus laevis, получение и обработка овоцитов подробно описаны в (Busch et. al. 1992). Овоциты инъецируют по 1 нг цРНК из NKCC, ENaC или MDEG с или без одновременной инъекцией h-sgk. Эксперименты с двухэлектродными клеммами напряжения и тока можно проводить через 2-8 дней после инъекции. Сдерживание фуросемидом проникновения Na+ посредством NKCC выявляют путем поглощения 22Na+ овоцитами, которое определяют с применением сцинтилляторного счетчика. Поток Na+ (ENaC) фильтруют при частоте 10 Гц и регистрируют с помощью самописца. Эксперименты проводят обычно на второй день после инъекции цРНК. Раствор в ванне содержит: 96 мМ хлористого натрия, 2 мМ хлористого калия, 1,8 мМ хлористого кальция, 1 мМ хлористого магния и 5 мМ HEPES при величине рН 7,5 и поддерживаемом потенциале -50 мV. Во всех экспериментах величину рН устанавливают путем титрования соляной кислотой или едким натром. Скорость протекания через ванну составляет 20 мл/мин, благодаря чему обеспечивается полная смена раствора в измерительной камере в течение 10-15 с. Все данные приведены в среднеарифметических величинах ±SEM.
Пояснения к чертежам
Фиг.1 Стимулирование экспрессии h-sgk с посредством фактора TGF1:
Экспрессия h-sgk стимулируется фактором TGF1. Показано действие фактора TGF1 по истечении 0,5-6 часов (вверху). Форболовый эфир PDD (4-альфа-форбол-12,13-дидеканоат; стимулирует протеин киназу С) и ионофор Са++ иономицин (Sigma, loc.cit; повышает внутриклеточную концентрацию Са++) одновременно стимулируют экспрессию h-sgk (внизу).
Фиг.2 Стимулирование экспрессии бигликана посредством фактора TGF1:
Экспрессия бигликана (В) стимулируется осмотическим набуханием клетки (гипо = h, вверху, слева) и фактором TGF1 (справа, вверху). В присутствии МКСС-ингибитора буметанида (b) действие фактора TGF1 на экспрессию бигликана почти полностью приостановлено (контроль = с).
Фиг.3 Стимулирование NKCC посредством h-sgk:
Поглощение 22Na+ овоцитами, сдерживаемое фуросемидом [поглощение (нмоль/20 мин/овоцит) = u], который экспримирует NKCC, массированно стимулируется посредством h-sgk. Овоциты, инъецированные NKCC, не характеризуются более высоким проникновением Na+, по сравнению с неинъецированными овоцитами (n.i.). Проникновение Na+ не сдерживается ингибитором NKCC фуросемидом (=F) (вверху). Экспрессия h-sgk сама по себе не приводит к стимулированию проникновения Na+. Соэкспрессия h-sgk с NKCC ведет к сильному увеличению проникновения Na+, которое полностью парализуется фуросемидом.
Фиг.4 Стимулирование ENaC посредством h-sgk:
Ток через ENaC (1) сильно возрастает благодаря соэкспрессии с h-sgk. Обработка овоцитов ингибиторами киназы стауроспорином (S) или хелеритрином (С) парализует активность Na+-канала благодаря h-sgk.
Фиг.5 Стимулирование ENaC посредством h-sgk может выглядеть противоположным образом вследствие соэкспрессии трансдоминантной ингибиторной киназы:
Овоциты, которые одновременно экспримируют ENaC и h-sgk, показывают намного больший ток (1) по сравнению с овоцитами, которые экспримируют только ENaC. Соэкспрессия трансдоминантной ингибиторной киназы приостанавливает стимулирование ENaC посредством h-sgk.
Фиг.6 Подавление MDEG посредством h-sgk:
Ток, вызванный MDEG (1), возрастает по мере увеличения продолжительности инкубирования [день (Т) 1-4]. Вследствие соэкспрессии с h-sgk ток полностью приостанавливается (пик = р; плато = pl).
Формула изобретения
1. Применение ингибитора h-sgk киназы хелеритрина или его аналога или трансдоминантно ингибиторной h-sgk киназы, у которой лизин в положении 127 заменен на аргинин, для приготовления лекарственного средства для снижения активности эпителиального натриевого канала и/или Na+, K+, 2Сl– сопереносчика при лечении заболеваний, выбранных из группы: цирроз печени, фиброзный панкреатит, фиброз легких, радиационный фиброз, склеродермия, кистозный фиброз, хронический бронхит, артериальная гипертония, болезнь Крона и болезнь Альцгеймера.
2. Трансдоминантно ингибиторная h-sgk киназа, у которой лизин в положении 127 заменен на аргинин.
РИСУНКИ
TH4A – Переиздание описания изобретения к патенту Российской Федерации
Причина переиздания: Коррекция в тексте формулы изобретения, библиографии и графической части изобретения
Извещение опубликовано: 27.04.2008 БИ: 12/2008
TK4A – Поправки к публикациям сведений об изобретениях в бюллетенях “Изобретения (заявки и патенты)” и “Изобретения. Полезные модели”
Напечатано: (57) 1. …Применение ингибитора h-sgk киназы хелетрина или…
Следует читать: (57) 1. …Применение ингибитора h-sgk киназы хелеритрина или…
Номер и год публикации бюллетеня: 34-2006
Код раздела: FG4A
Извещение опубликовано: 27.04.2008 БИ: 12/2008
TZ4A – Поправки к описаниям изобретений
Часть описания, где обнаружена ошибка: Титульный лист,страница 1
Напечатано: (56) EP 0861898A,…
Следует читать: (56) EP 0861896A,…
Номер и год публикации бюллетеня: 34-2006
Извещение опубликовано: 27.04.2008 БИ: 12/2008
MM4A – Досрочное прекращение действия патента СССР или патента Российской Федерации на изобретение из-за неуплаты в установленный срок пошлины за поддержание патента в силе
Дата прекращения действия патента: 20.04.2009
Извещение опубликовано: 20.07.2010 БИ: 20/2010
|